图片来源:诺贝尔生理学或医学委员会
北京时间2026年10月5日17时30分,瑞典卡罗林斯卡医学院(Karolinska Institutet)在斯德哥尔摩宣布,将2026年诺贝尔生理学或医学奖授予美国斯坦福大学教授卡尔·代塞尔罗斯(Karl Deisseroth)、德国柏林洪堡大学教授彼得·黑格曼(Peter Hegemann)以及德国维尔茨堡大学教授格奥尔格·纳格尔(Georg Nagel),以表彰他们在“光门控离子通道和光遗传学”领域的开创性发现。三人将平分1200万瑞典克朗奖金。
这项技术的源头,并非对人类大脑复杂回路的研究,而是池塘里一株向光游动的单细胞绿藻。更富戏剧性的是,这项如今站上科学最高领奖台的成果,其奠基性论文在21年前曾被《科学》(Science)拒稿。
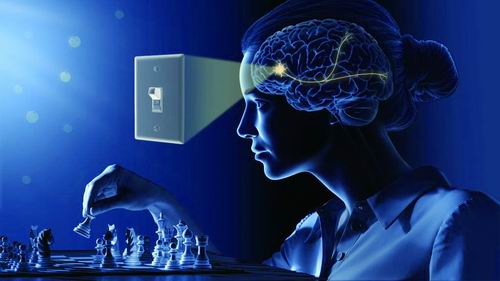
从一株不起眼的绿藻,到一束照进大脑深处的蓝光,光遗传学用20余年的时间,走完了一段从基础研究冷僻角落通向医学革命的传奇之路。
为什么神经科学需要“一个开关”
人类大脑拥有约860亿个神经元,它们相互缠绕、分工极细,构成了自然界最复杂的器官。长久以来,理解特定神经元的功能一直是神经生物学研究的核心挑战。如果能特异性地激活某一类神经元,科学家就能通过观察随后的生理现象推测其功能;反之,若能特异性地抑制它,就能确定其在特定行为中的必要性。
然而,在整个20世纪,神经科学家们手头的工具却显得捉襟见肘。
传统研究主要依赖微电极刺激或化学药物注入。电刺激虽然迅速,却难以只作用于目标细胞,电极周围的神经元往往会被同时影响,容易造成信号混杂。这就像研究手表内部结构时,直接用一把大锤砸向表盘。而化学药物虽然可以利用受体等机制获得一定选择性,却通常难以同时兼顾细胞类型特异性与毫秒级的时空控制。
由于缺乏精准的调控手段,20世纪的神经科学只能绘制出“脑区草图”,却无法回答“究竟是哪一类神经元在何时按下了行为的按钮”。
早在1999年,DNA双螺旋结构的发现者弗朗西斯·克里克(Francis Crick)就在一次讲座中指出了这一困境。他提出,要真正研究大脑,就需要一种能够精准控制特定类型神经元的手段;在他设想的工具中,光具有与神经电活动相匹配的速度优势。但在当时,用光来直接操纵神经元的想法在许多人看来犹如科幻小说。
绿藻里的秘密——黑格曼的“十年假说”
光的开关在大脑中并不天然存在,它的零部件隐藏在微生物的演化史中。
20世纪70年代初,德国生物化学家迪特尔·奥斯特黑尔特(Dieter Oesterhelt)与美国学者斯托克尼乌斯合作,在咸水湖的盐沼盐杆菌(Halobacterium salinarum)中发现了一种含有视黄醛的紫膜蛋白——细菌视紫红质(bacteriorhodopsin)。他们证实,该蛋白能吸收光能、把质子泵出细胞,相当于一台微型光能发电机,这为后来利用微生物视蛋白把光信号转换为细胞膜电活动奠定了重要基础。此后,研究者又发现了能够将氯离子泵入细胞的嗜盐菌视紫红质(halorhodopsin)。
故事的关键转折发生在20世纪90年代初。当时在德国马普生物化学所建立实验室的黑格曼,正潜心研究莱茵衣藻(Chlamydomonas reinhardtii)的趋光性。这种单细胞绿藻靠眼点感光,靠鞭毛向着光源游动以进行光合作用。黑格曼用微电极测定衣藻的光响应时惊奇地发现,光打到眼点后,在0.5毫秒内就产生了光电流。作为对比,动物视觉感光通常需要经过多级分子信号级联,因此响应过程更为复杂。
这一异常迅速的响应使黑格曼提出了一个在当时颇为大胆的假说:在衣藻体内,感光与通道开关是由同一个蛋白直接完成的——“一个分子,既当‘眼睛’,又当‘闸门’”。然而,在接下来的十年里,由于衣藻眼点蛋白离体后极不稳定,黑格曼团队尝试了各种生物化学提纯方法,均无法直接分离出该蛋白来验证猜想。
转机来自分子生物学。2001年前后,黑格曼团队从衣藻的cDNA数据库中筛选出了两个与已知光敏蛋白同源的基因。他找到擅长利用非洲爪蟾卵母细胞做异源表达的电生理学家纳格尔。纳格尔将这两个基因注射进爪蟾卵母细胞中,成功测出了干净利落的光控电流。
2002年,团队将第一个基因命名为通道视紫红质-1(ChR1),并将相关研究发表于《科学》杂志,证明其为光门控质子通道。2003年,他们又在美国《国家科学院院刊》(PNAS)上发表了通道视紫红质-2(ChR2),证明其在蓝光照射下0.2毫秒内即可打开,允许阳离子顺浓度梯度快速流入。更关键的是,他们将ChR2导入人类胚胎肾细胞(HEK)等哺乳动物细胞中,发现原本对光毫无反应的细胞在蓝光下也出现了明显的膜去极化和光电流。
纳格尔和黑格曼在论文结论里写下一句意味深长的话:ChR2或许能成为控制细胞内钙离子浓度或细胞膜极化水平的有用工具,特别是在哺乳动物细胞中。
搬进大脑——代塞尔罗斯的关键一跃
将藻类蛋白彻底转变为活体大脑调控工具的历史重任,落在了年轻的精神科医生兼神经科学家代塞尔罗斯身上。
代塞尔罗斯长期在斯坦福从事临床精神科工作,接诊情感障碍、自闭症谱系障碍等患者。他意识到,这些精神疾病并非病人“想不开”,而是大脑内部特定回路发生了“卡顿”,而离体脑切片研究,无法解答“活体大脑中究竟是哪类细胞在什么情境下驱动了行为”。
2000年前后,在斯坦福钱永佑实验室研究小脑神经回路的研究生爱德华·博伊登(Edward Boyden),与代塞尔罗斯相遇。工程背景的博伊登和医学背景的代塞尔罗斯常常讨论当时神经生理学的技术局限,两人决定自己动手开发控制神经元的工具。最初的设想是用磁场:在神经元中表达机械敏感的离子通道,再把微小磁珠连到通道上,用外部磁场拉动。但无论找基因还是连磁珠,技术难度都太大。
就在两人为磁控方案查阅文献时,纳格尔、黑格曼等人的ChR2论文发表了。博伊登读后立刻意识到,这个蛋白拥有他们设想的一切特性:在一个分子里,把输入信号(光)和输出信号(神经元去极化)偶联起来。2004年3月,代塞尔罗斯联系纳格尔索要ChR2克隆。纳格尔寄来了经过改良的版本——带有有助于稳定结构的H134R突变,并融合了可用于示踪的黄色荧光蛋白(YFP)。
2004年8月4日凌晨1点,博伊登在钱永佑实验室里用蓝光照射表达了ChR2的神经元,记录了去极化和动作电位。他在实验室里兴奋地折腾了一整夜,清晨给代塞尔罗斯发邮件:“很累,但很爽”(Tired, but excited)。代塞尔罗斯回信:“太棒了!!!!!”他连续用了五个感叹号。
2005年初,张锋加入代塞尔罗斯实验室,并参与开发用于递送ChR2的慢病毒载体。同年4月,他们的论文被《科学》拒稿;随后于5月转投《自然》,后由该刊转送《自然-神经科学》,并于2005年8月发表。2006年,代塞尔罗斯将这种结合光学与遗传学调控神经活动的方法正式命名为“光遗传学”(Optogenetics)。
此后两年,这套工具进一步用于活体动物。2007年,代塞尔罗斯团队展示了将光纤与光源耦合、植入小鼠脑内的光学神经接口,可在自由活动的小鼠中以光脉冲诱发特定的运动反应;同年,团队还利用光遗传学激活下丘脑中的下丘脑分泌素(orexin)神经元,证明特定神经元活动可以促使睡眠中的小鼠苏醒。2012 年,代塞尔罗斯作为合作者参与利根川进团队的研究:利用光遗传学技术,重新激活小鼠海马齿状回中在恐惧学习时被标记的一组记忆印迹神经元;蓝光刺激这些细胞后,小鼠出现恐惧僵直行为。这项小鼠实验首次直接证明,重新激活学习时被标记的特定神经元集群,就足以诱发与该学习经历相关的恐惧记忆表达。
《医学科学报》 (2026-10-09 第3版 封面)